
El premio Nobel de Fisiología o Medicina 2026: de un alga al control de la actividad neuronal por medio de luz
Escrito por:
Dr. Fatuel Tecuapetla Aguilar
Visto: 72 veces
El premio Nobel de Fisiología o Medicina 2026: de un alga al control de la actividad neuronal por medio de luz
Dr. Fatuel Tecuapetla Aguilar
El Dr. Tecuapetla Aguilar es investigador titular B de tiempo completo en el Instituto de Fisiología Celular de la Universidad Nacional Autónoma de México e Investigador Nacional Nivel 2. En su investigación, estudia la contribución de circuitos neuronales a la generación de movimientos voluntarios por medio de optogenética.
Esta publicación fue revisada por el comité editorial de la Academia de Ciencias de Morelos.
Este 5 de octubre se anunció como ganadores del premio Nobel de Fisiología o Medicina 2026 a los investigadores Peter Hegemann, Georg Nagel y Karl Deisseroth, por sus contribuciones al desarrollo de la optogenética. La optogenética es la combinación de herramientas ópticas y de biología molecular que permite el control de eventos específicos por medio de la luz. Una de sus aplicaciones más interesantes y prometedoras es el lograr la activación o inhibición de células nerviosas específicas (neuronas) con la simple aplicación de luz. En este artículo, relataré cómo se logró llegar a un avance tan importante y sus posibles aplicaciones en el futuro.
Todo empezó con un alga verde respondiendo a la luz
Los inicios de la optogenética se remontan a un alga verde unicelular, del género Chlamydomonas. Esta alga es un organismo acuático microscópico (de 10 micrómetros de diámetro), con un solo “ojo” y dos flagelos que, en conjunto, guían el nado de este organismo hacia la luz (Figura 1A). Aunque los primeros estudios de microalgas verdes datan de 1817, la primera descripción de una de estas algas respondiendo a estímulos de luz sucedieron hasta 1878. Casi medio siglo después, en 1916, se estableció que estos organismos detectan la luz a través de un organelo identificado como “el ojo” de esta alga (estructura naranja en la Figura 1A). La detección de luz a través de este “ojo” influye en su movimiento flagelar, permitiendo el nado del alga hacia la luz (Figura 1B). Medio siglo después se documentó que este proceso depende del ion calcio, hallazgo muy importante que dio paso al descubrimiento crucial del mecanismo por el cual el “ojo” de las Chlamydomonas detecta luz, identificando que esta detección es mediada por una proteína muy especial, la rodopsina (1). Los humanos también tenemos rodopsinas, que son las proteínas que nos permiten detectar luz a través de células que se ubican en la retina de nuestros ojos.
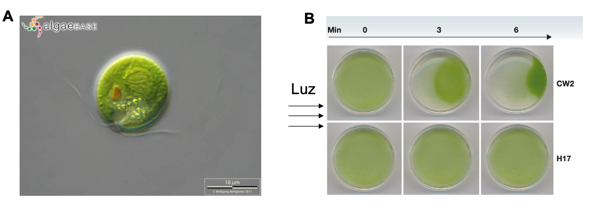
Figura 1. La luz influye en la motilidad de las Chlamydomonas. A) Fotomicrografía de un alga del género Chlamydomonas ilustrando sus dos flagelos y una estructura color naranja que se conoce como su “ojo” (Fuente: https://www.algaebase.org/search/images/detail/?img_id=35657). B) Una cepa normal de Chlamydomonas (CW2) es capaz de moverse hacia la luz conforme pasa el tiempo de exposición (lado derecho de cada figura), mientras que una cepa de Chlamydomonas que carece de channelrhodopsine (H17) es incapaz de moverse hacia la luz (Fuente: referencia 2).
La contribución de Peter Hegemann al desarrollo de la optogenética
Consciente de los antecedentes mencionados, Peter Hegemann (investigador alemán nacido en 1954) se propuso aclarar lo que sucedía en estas algas Chlamydomonas cuando se iluminaban con pulsos de luz. Para lograr esto, su grupo de investigación estudió células individuales de estas algas por medio de una micropipeta de vidrio, que les permitió registrar el flujo de corriente transmembranal mientras las iluminaban con pulsos de luz. De estos registros, los grandes hallazgos fueron la rapidez con que se generaban las corrientes transmembranales en respuesta a la luz (el flujo transmembranal sucedía en milésimas de segundo), así como la observación de que lo que fluía a través de las membranas era un ion cargado positivamente: el calcio (3). Esto sugirió la posibilidad de que la rodopsina de Chlamydomonas no solamente detectaba la luz, sino que también funcionaba como un canal que permitía el paso de iones (4).
La contribución de Georg Nagel
La comprobación que la rodopsina aislada del “ojo” de las Chlamydomonas era a la vez un canal iónico solo se cristalizó con la colaboración entre los grupos de investigación de Hegemann y Nagel (este último también alemán, nacido en 1953). Hegemann había estado tratado de aislar las proteínas que daban sensibilidad a la luz del “ojo” de las Chlamydomonas: si lograban establecer la producción de corriente en respuesta a la luz con la rodopsina purificada, esto demostraría que funcionaban a la vez como detectoras de luz y canales iónicos. Sin embargo, resultó imposible aislar a la rodopsina de manera pura.
Mientras tanto, el laboratorio de Nagel dominaba una técnica que consistía en inyectar genes aislados en células enteramente distintas, como el ovocito de rana logrando la expresión especifica de proteínas en un sistema nuevo. Por lo tanto, la colaboración entre Hegemann y Nagel se concentró en la posibilidad de expresar la secuencia de ADN que codificaba para la rodopsina identificada en el “ojo” de las Chlamydomonas en ovocitos de rana. Si estos ovocitos modificados respondieran a la luz con la formación de una corriente transmembranal, esto probaría que la rodopsina desempeña ambas funciones. Para lograr esto, primero identificaron la posible secuencia de ADN que podría estar codificando para la rodopsina de Chlamydomonas (2). Esta secuencia se inyectó en un ovocito de rana, que a su vez procesaba este ADN para expresar la proteína codificante, en este caso en la membrana del ovocito, al ser una proteína transmembranal. Al estudiar estos ovocitos de rana modificados (Figura 2) encontraron que ante cada pulso de luz se evocaba una corriente transmembranal entrante de iones cargados positivamente (5). Los resultados de estos experimentos fueron la prueba irrefutable de una clase completamente nueva de rodopsinas (sensible a la luz y canal iónico a la vez; la de nuestros ojos no es un canal iónico). A esta nueva rodopsina la bautizaron como Channelrhodopsine-2 (siendo este un canal catiónico, con sensibilidad a la luz, capaz de responder en el rango de milisegundos). Hegemann y Nagel lograron demostrar algo más: si introducían el gene que codificaba para la Channelrhodopsine-2 en células de hígado humanas y en otras células de mamífero, dichas células al ser iluminadas con luz presentaban flujos iónicos (2). Las funciones de la Channelrhodopsine-2 se mantenían al expresarse aún en células muy alejadas evolutivamente de las algas, como las células de mamíferos.
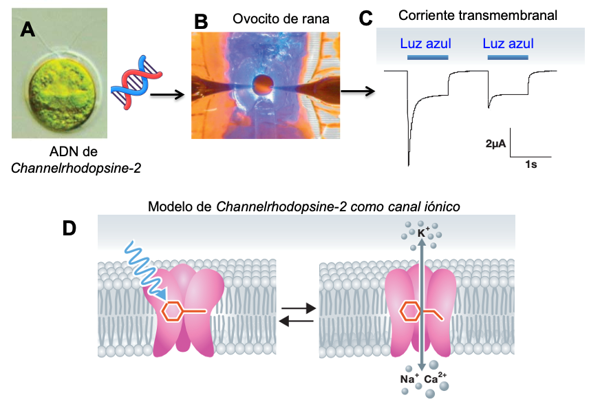
Figura 2. Del ADN hasta el modelo de canal iónico de Channelrodhopsina-2 (ChR2). A) Representación del aislamiento del ADN que codifica para ChR2. B) Este ADN fue inyectado en un ovocito de rana; el ovocito aparece al centro, a los lados están las micropipetas de vidrio por las cuales se pudo registrar su corriente transmembranal al ser iluminado con luz azul. C) Trazos de corriente transmembranal mediada por ChR2 al ser iluminada por luz azul. D) Modelo de Channelrodhopsine-2 (rosa) como canal iónico transmembranal (gris). Este canal contiene retinol en su interior, que al detectar luz azul sufre un cambio conformacional que abre el canal, permitiendo el flujo de iones al interior de la célula que expresa ChR2, generando despolarización. B-D son imágenes tomadas de la referencia 2.
La contribución de Karl Deisseroth
El trabajo de Karl Deisseroth (estadounidense nacido en 1971, el tercer galardonado del premio Nobel de fisiología o medicina 2026) aportó un giro revolucionario en esta historia. Debido a su formación en psiquiatría, era muy consciente de un tipo celular en que la formación de un flujo de iones es esencial para su actividad: las células nerviosas (neuronas). El interior de las neuronas suele tener una carga eléctrica negativa, pero en respuesta a señales fisiológicas se produce un cambio en flujos iónicos, introduciendo iones positivos (como sodio o calcio) volviendo el interior de la neurona con carga positiva (despolarización). Cuando esta despolarización es marcada se genera un pulso eléctrico (potencial de acción) que se transmite de una neurona a otra. De estas variaciones en flujos iónicos en las neuronas depende todo el funcionamiento del cerebro.
Deisseroth se percató que la channelrodhopsine-2 (ChR2) hace precisamente eso: en respuesta a un estímulo (luz azul) genera un flujo hacia el interior de la célula de iones positivos (sodio y calcio), provocando despolarización. Por tanto, razonó que si introducía ChR2 en neuronas en cultivo tal vez podría controlar su actividad, generando potenciales de acción en respuesta a la luz. Cuando su grupo de investigación introdujo ChR2 en neuronas en cultivo (provenientes de una región del cerebro, el hipocampo), encontraron que, al iluminarlas con pulsos de luz, podían controlar la actividad neuronal, generando potenciales de acción (Figura 3) en solo milisegundos (6).
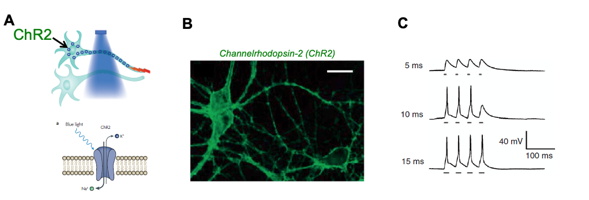
Figura 3. La expresión de Channelrhodopsine-2 (ChR2) en neuronas permite el control de su actividad neuronal con pulsos de luz. A) Imagen superior: Diagrama representando la expresión de ChR2 en una de las dos neuronas representadas. Diagrama de abajo, representación de ChR2 como canal iónico transmembranal que al ser iluminado con luz (azul) se abre y permite el flujo de iones cargados positivamente: sodio (Na+) y calcio (Ca2+) al interior de la célula. B) Fotomicrografía de neuronas hipocampales en cultivo expresando ChR2-eYFP, escala 15 micras (línea blanca). C) Registros del potencial de membrana de una neurona expresando ChR2-eYFP mostrando respuestas despolarizantes (deflexiones hacia arriba en el potencial de membrana) ante pequeños pulsos de luz. Nótese como incrementar la duración de los pulsos de luz logró una despolarización suficiente para alcanzar la generación de potenciales de acción ante cada pulso de luz. B y C son imágenes tomadas de la referencia 6.
La contraparte de Channelrhodopsine-2.
Una vez descrita la posibilidad de controlar la generación de potenciales de acción en neuronas, una pregunta natural fue si se podía encontrar algo similar para poder inhibir la generación de potenciales de acción. La generación de potenciales de acción requería una despolarización (más positivo) por lo que para inhibir su generación se requiere hiperpolarización (más negativo). Esto lo lograron con una nueva opsina, proveniente de microorganismos arqueas que viven en altas concentraciones de sal, conocidos como halobacterias. Esta nueva opsina, la Halorhodopsina (NpHR; ref. 7) funciona como una bomba de cloruro, que se activa ante la iluminación con luz amarilla. Como el ion cloruro tiene carga negativa, cuando esta bomba se activa y transporta cloruro al interior de las neuronas, estas se hiperpolarizan, disminuyendo su probabilidad de generar actividad. Esto fue justo lo que encontraron: al introducir NpHR en neuronas y registrar su actividad, encontraron que podían suprimir la formación de potenciales de acción al iluminar con luz amarilla.
¿Por qué la aparición de ChR2 y NpHR es tan importante?
La descripción de estas opsinas mostró que se podían usar estas proteínas para controlar la actividad neuronal. Abrió la puerta para su uso como herramientas para poder evaluar las funciones de circuitos neuronales específicos de manera causal; permitiéndonos realizar experimentos de ganancia o pérdida de función en la relación actividad neuronal y procesos celulares o conductuales (un sueño hecho realidad para la neurofisiología). Esto en un amplio rango de modelos animales (desde gusanos microscópicos hasta primates), dado que la generación de actividad neuronal en cualquier tipo de célula excitable depende de la despolarización de esta (ahora posible con ChR2 y luz) o su inhibición (posible por NpHR y luz). Desde la descripción de estas opsinas, el número de artículos mencionando optogenética ha aumentado rápidamente (15,788 artículos publicados hasta hoy en PUBMED, buscador de literatura de biomedicina y ciencias de la salud y biología). Otra razón de su importancia es que su publicación inspiró otra serie de desarrollos que también resultan de la combinación de herramientas ópticas y de biología molecular como la generación de proteínas artificiales para la medición de moléculas por medio de fluorescencia (p. ej. sensores de neurotransmisores o de actividad neuronal). El desarrollo de estas nuevas herramientas es un parteaguas en nuestras capacidades de medición de moléculas relevantes para el funcionamiento del sistema nervioso.
La revolución de poder controlar la actividad neuronal con opsinas
El interés de Deisseroth por la psiquiatría lo llevó a usar la optogenética para estudiar cómo la actividad de circuitos neuronales específicos controla funciones como el pasar de sueño a vigilia, información importante para entender la neurobiología de la narcolepsia y desórdenes del sueño (8), cómo los circuitos neuronales controlan los movimientos en animales sanos o con enfermedades similares a la de Parkinson (9) o descifrando circuitos de la conducta y la ansiedad (10).
Esta aproximación que el laboratorio de Deisseroth hizo posible, desató una intensa actividad en la comunidad internacional. Desde el inicio de sus publicaciones de opsinas, las secuencias para poderlas expresar siempre han sido de dominio público, ya sea porque su laboratorio las depositó en repositorios públicos en donde cualquiera las puede comprar, o porque por comunicación directa su laboratorio las comparte con la comunidad [de esto último doy testimonio al haberme beneficiado, durante mi estancia posdoctoral, con el uso de la versión de ChR2 que publicó en 2005 para evidenciar que neuronas que se pensaban exclusivamente dopaminérgicas también co-liberan glutamato (11)].
¿Está lista la optogenética para resolver problemas en humanos?
Hasta el momento solo existe un estudio con pruebas en un ser humano ciego, al que se le expresó una modificación de ChR2 (activable con luz roja) en la retina (ChrimsonR). Este es un caso muy particular, en el que se aprobó un protocolo experimental para darle al paciente sensibilidad a la luz a través de estas herramientas de optogenética. El caso fue recientemente publicado (12), encontrando que, posterior a la expresión de ChrimsonR y con el uso de unos lentes especiales que traducían estímulos lumínicos en pulsos de luz para activar ChrimsonR, la corteza visual de esta persona respondía a estímulos lumínicos, sugiriendo que recuperó cierta sensibilidad a la luz. No obstante lo alentador de esta noticia para la posibilidad de usar estas herramientas en humanos, este estudio significa un solo caso de los 15,559 artículos de investigación que hoy aparecen utilizando la palabra optogenética. A la fecha el uso principal de la optogenética es en modelos animales para investigación y está lejos de trasladarse a su uso en humanos, aunque podría predecir que en el futuro habrá más investigación que lleve a tratamientos para diversas enfermedades.
La optogenética en México
Desde la aparición de la optogenética, el uso de opsinas (o sus versiones modificadas) para el estudio de las funciones los circuitos neuronales, se ha posicionado como una estrategia básica en los laboratorios de neurociencias. Esto ha marcado un antes y un después de su incursión dentro de todos los laboratorios del mundo que hacen investigaciones para entender el funcionamiento del sistema nervioso. México no ha sido la excepción, muchas instituciones nacionales, ya sea por reclutamiento de nuevos investigadores o porque los ya existentes se capacitaron en el uso de estas técnicas, se encuentran formando una generación de personas jóvenes ya inmersas en el uso de estas técnicas e incorporando su uso en el estudio de la contribución de circuitos neuronales a procesos celulares y/o conductuales. No obstante, aún se requieren esfuerzos institucionales para poder desarrollar nuestras propias herramientas, ya que por el momento dependemos de importarlas de repositorios internacionales, un desafío aún por solucionar.
Referencias
- Foster KW, Saranak J, Patel N, Zarilli G, Okabe M, y col. (1984) A rhodopsin is the functional photoreceptor for phototaxis in the unicellular eukaryote Chlamydomonas. Nature 311: 756-759. doi: 10.1038/311756a0
- Hegemann P, Nagel G. (2013). From channelrhodopsins to optogenetics. EMBO Mol Med. 5:173-176. doi: 10.1002/emmm.201202387
- Harz H, Hegemann P (1991) Rhodopsin-regulated calcium currents in Chlamydomonas. Nature 351: 489-491. doi: 10.1038/351489a0
- Braun FJ, Hegemann P (1999) Two light-activated conductances in the eye of the green alga Volvox carteri. Biophys J 76: 1668-1678. doi: 10.1016/S0006-3495(99)77326-1
- Nagel G, Szellas T, Huhn W, Kateriya S, Adeishvili N, y col. (2003) Channelrhodopsin-2, a directly light-gated cation-selective membrane channel. Proc Natl Acad Sci USA 100: 13940-13945. doi: 10.1073/pnas.1936192100
- Boyden ES, Zhang F, Bamberg E, Nagel G, Deisseroth K (2005) Millisecond-timescale, genetically targeted optical control of neural activity. Nat Neurosci 8: 1263-1268. doi: 10.1038/nn1525
- Zhang F, Wang LP, Brauner M, Liewald JF, Kay K, y col. (2007) Multimodal fast optical interrogation of neural circuitry. Nature 446(7136):633-639. doi: 10.1038/nature05744
- Adamantidis AR, Zhang F, Aravanis AM, Deisseroth K, de Lecea L (2007) Neural substrates of awakening probed with optogenetic control of hypocretin neurons. Nature 450(7168):420-424. doi: 10.1038/nature06310
- Gradinaru V, Mogri M, Thompson KR, Henderson JM, Deisseroth K (2009) Optical deconstruction of parkinsonian neural circuitry. Science 324(5925):354-359. doi: 10.1126/science.1167093
- Tye KM, Prakash R, Kim SY, Fenno LE, Grosenick L, y col. (2011) Amygdala circuitry mediating reversible and bidirectional control of anxiety. Nature 471(7338):358-362. doi: 10.1038/nature09820
- Tecuapetla F, Patel JC, Xenias H, English D, Tadros I, y col. (2010) Glutamatergic signaling by mesolimbic dopamine neurons in the nucleus accumbens. J Neurosci. 30(20):7105-7110. doi: 10.1523/JNEUROSCI.0265-10.2010
- Sahel JA, Boulanger-Scemama E, Pagot C, Arleo A, Galluppi F, y col. (2021) Partial recovery of visual function in a blind patient after optogenetic therapy. Nat Med. 27(7):1223-1229. doi: 10.1038/s41591-021-01351-4
Esta columna se prepara y edita semana con semana, en conjunto con investigadores morelenses convencidos del valor del conocimiento científico para el desarrollo social y económico de Morelos.
Más publicaciones
 Desarrollado por Linabat